domingo, septiembre 06, 2009
Paul Kammerer, Epigenética moderna, y Lamarckismo
martes, junio 16, 2009
El concepto sistémico de Homología es la noción de linaje (con ejemplos de simbiosis)
Maturana y Mpodozis se plantean la evolución en términos de la conservación y cambio de los fenotipos ontogénicos. La repetición de un fenotipo ontogénico caracteriza a un linaje y es posible gracias a la conservación de aspectos del genotipo total (la estructura resultate de la reproducción) así como la conservación de aspectos del nicho ontogénico, el cual comprende el modo de encuentro del ser vivo con el medio (conducta). La repetición transgeneracional de un fenotipo transcurre de manera sistémica, y no puede ser reducida, ni al genotipo total, ni al medio. Cuando un nuevo fenotipo ontogénico empieza a conservarse, tenemos que se ha establecido un nuevo linaje.
En biología evolutiva, la noción de linaje suele relacionarse con ideas poblacionales y de interfecundidad (especies). Sin embargo, estas nociones rara vez rescatan el fenómeno de la conservación de un fenotipo característico. La noción sistémica de linaje, a nivel organísmico, permite ver que la conservación sistémica de un fenotipo característico es algo que en realidad es mucho más amplio que el fenómeno de la especie. Maturana y Mpodozis son bastante explícitos:
“Thus, for example, and said explicitly, the ongoing existence of any particular organism entails the simultaneous conservation of: its autopoietic organization (either of first or second order, or both, according to the case), the organization proper to the organism under consideration, the different organizations of its different types of cells, and the different organizations of its different organs.
[…]
"The reproduction of an organism involves or implies as a consequence the simultaneous reproduction of all the subsystems that through their structural intersection with it participate in its realization. It is because of this that the evolutionary history of living systems is a history of conservation and change not only of lineages of organisms (see 3.11 below and also appendix, "lineage" and "phylogeny"), but also of lineages of other kinds of systems that intersect with them in their structural realization"
[…]
"the same occurs with entities or systems of other kinds, such as organs or systems of organs that as particular subsystems also intersect in their realization with the realization of the living system that carries them. Such systems as organs are also conserved through the reproduction of the system that carries them. We do not usually consider organs as independently existing entities because we do not easily see the domain in which they exist as such. Yet, if we attend to the evolutionary history of organs, we can see that they form lineages defined by the conservation of some particular epigenic morphogenetic pattern through the successive generations of the carrier living system in the conservation of the realization of its niche.”
De esta forma, la repetición sistémica de un fenotipo característico también puede observarse en los distintos sistemas que componen un organismo; es decir, el concepto de linaje abarca el fenómeno de la homología (cuando claramente podemos reconocer la misma estructura, por ejemplo, un riñón, en diferentes especies).
De manera similar, quisiera agregar aquí a la lista de fenotipos característicos, los propios a las diferencias sexuales. En realidad, hablar del fenotipo característico de una especie sexuada es hablar de dos fenotipos, el del macho y el de la hembra, que se diferencian por el genotipo total y/o el nicho ontogénico (ambos documentados). Desde un punto de vista sistémico, tenemos dos linajes: dos fenotipos característicos que se repiten, y que son tan distinguibles como una especie lo es de otra. Pero en este caso, no hay ningún aislamiento reproductivo y genético entre estos linajes; lo cual pone de relieve que la diferenciación de estos fenotipos ocurre de manera puramente estructural y sistémica. De manera similar, las diferentes castas de los organismos eusociales tienen fenotipos característicos, por lo que cada uno de ellos constituye un linaje, pese a que toda la comunidad proviene de la reproducción de una sola “reina” (de manera quizás muy similar a cómo los distintos órganos se diferencian pese a haberse originado de un mismo cigoto).
Homología y Simbiosis
Habiendo ya indicado que tanto las homologías como las especies son instancias particulares del concepto sistémico de linaje, no nos debería extrañar demasiado que exista una “zona gris” en la que homología y especie puedan confundirse. En la evolución nos encontramos con esta situación en el establecimiento de relaciones simbióticas. Entre células eucariontes, sabemos que la mitocondria es un endosimbionte; sin esta información, sin embargo, la reconoceríamos como un órgano homólogo y esencial, reconocible a través de las diferentes especies de eucariontes. Un caso recientemente documentado es acaso más enfático: los cnidocystos son un tipo celular de los cnidarios que son muy semejantes a algunos organismos unicelulares (ambos tienen un mecanismo de “arpón”). Esto coincide con la aparición aparentemente “de novo” de muchos genes relacionados al cnidocysto en cnidarios, por lo que se ha planteado que ha ocurrido la asimilación de un simbionte unicelular[1]. Nótese que el fenotipo del cnidocysto (especialmente, el arpón) se ha mantenido, pese a que ahora pasó a desarrollarse a partir del genotipo total del cnidario, del mismo ovocito fecundado que para cualquier otro tipo celular del cuerpo.
El posible origen simbiótico de los cnidocystos nos abre la pregunta: qué tan diferente es realmente su caso, del de cualquier otro tipo celular? Cada uno es un linaje que se diferencia de manera sistémica ( y sin participacion de diferencias de ADN, cuyo contenido es el mismo en las diferentes células del cuerpo). La única diferencia es que en el caso del cnidocysto, es posible reconstruir una continuidad histórica de la mantención de ese fenotipo celular, con un linaje que originalmente era independiente y perteneciente a su propia especie. De la endosimbiosis de dos linajes diferentes, pasamos al fenomeno de la homologia. Como en el caso de la mitocondria, el linaje pre-existe por separado, previo a su incorporacion al linaje portador.
Aun es posible entregar mas ejemplos en que el límite entre distintos tipos de linajes se ha vuelto borroso gracias a la simbiosis; es el caso de una hormiga esclavista, en la que una de sus castas se ha originado por hibridización con otra especie previamente esclavizada; es decir, el fenotipo pre-existía como una especie diferente, antes de existir como una casta de la hormiga esclavista.
La repeticion de un tipo característico es un fenómeno que observamos a niveles tan dispares como el de la especie, el sexo, y las homologias; ocurre en todos ellos pese a las grandes diferencias en origen ontogénico, reproductivo y evolutivo. Esto pone de relieve una vez más que la conservación de un fenotipo característico es, ante todo, un fenómeno sistémico.
-A. Vargas
[1] Los cnidocystos también han podido re-desprenderse del cuerpo del cnidario y vuelto a vivir como unicelulares (myxospora)
domingo, marzo 22, 2009
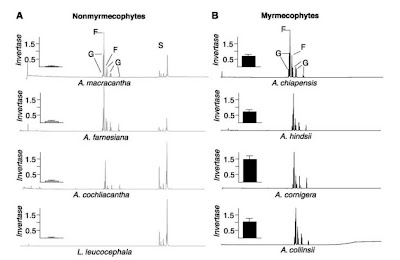
Plant-Insect Horizontally Tranferred Interaction between Mirmecophyte Plants and Ants


martes, marzo 03, 2009
Homeosis de dedos de dinosaurios: Cuando la evolución predice las posibilidades del desarrollo


martes, febrero 10, 2009
El comienzo del EvoDevo de las Aves
miércoles, enero 07, 2009
Origen de las especies por medio de la deriva natural
domingo, diciembre 28, 2008
Niles Eldredge en la Universidad de Chile
El pasado 3 de diciembre Niles Eldredge dio una charla en el auditorio Herman Niemeyer del edificio milenio de la Facultad de Ciencias de la Universidad de Chile. La charla fue básicamente sobre la investigación histórica de Niles de la vida de Darwin: entre otros detalles mencionó cómo el hallazgo de un Capibara fósil de gran tamaño había sido descrito por Darwin, ya en sus notas en el Beagle, como un posible ancestro del Capibara actual. Eldredge dejó en claro que, dado su abuelo Erasmo, y un influyente profesor evolucionista que tuvo en escocia, Darwin tuvo siempre a la evolución en mente antes y durante su viaje del Beagle, pese a que después afirmara haber llegado la conclusión de la evolución sólo después de su viaje, y como mero resultado de numerosas y meticulosas observaciones empíricas. Tramposín! Por motivos quizás "políticos" Darwin explotó aquel "mito" del quehacer cientifico, a sabiendas de su falsedad. Eldredge también habló de la "genialidad" de Darwin en haberse dado cuenta del operar de la selección natural a partir del principio maltusiano de la superproductivifdad, combinado con el hecho de la existencia de variaciones hereditarias... momentos de la charla en los que yo sacudía enfáticamente la cabeza de lado a lado, fastidiado. Al finalizar la charla le hice una pregunta al respecto. Si la superproductividad siempre está produciendo competencia entre las distintas variantes, porqué la estasis es lo más común en el registro fosil? No debería haber siempre evolución darwiniana por competencia? Como había dicho el mismo Eldredge alguna vez, junto a su camarada Gould, "Stasis is Data", es decir, es un hecho que las especies pueden pasar millones de años sin cambiar. Un hecho que nos dice algo.jueves, diciembre 25, 2008
Predicting the evolution of Theropod arm size

In 1999 I published an article in the (cryptic) monthly news bulletin of the Museum of Natural History of Chile, entitled "Evolution of Arm Size in Theropod Dinosaurs: A Developmental Hypothesis". In this work, which I did as an undergrad, I tackled what seemed a consistent trend among species of theropod dinosaurs, the presence of proportionally smaller arm sizes in species with larger body size. Femur size correlates quite directly with body size in dinosaurs: I therefore took femur size as an indicator of body size and making a linear regression I obtained that Humerus = 0,387 (Femur)^0,6807, with a rather nice determination coefficient, R^2 = 0,89. It is, of course, very remarkable that this negative allometry would so nicely predict theropod humerus size. Rather than the usual adaptive explanations, I presented a developmental hypothesis: The ontogeny of the most recent common ancestor of the theropods presented slower growth of the arm than of the leg, with arms that were proportionally larger earlier in ontogeny, at smaller body sizes. Thereafter, evolutionary variation of different body sizes in different species descended from this ancestor simply reflected conservation of this ontogenetic trait, with smaller- or larger-looking arms as a consequence of body-size variation, rather than any process of "local" adaptation. In this context, the very bird-like dromaeosaurid dinosaurs would owe their proportionally large arms to their small body size. If this were indeed correct, if a dromaeosaurid species would evolve a larger body size, we would expect it to show short arms, unlike those of its small-sized, long-armed ancestors.

viernes, diciembre 19, 2008
miércoles, noviembre 26, 2008
Quick comments on Odontochelys
Odontochelys is the new basalmost triassic turtle, with a plesiomorphic ("primitive") presence of teeth (hence the name) and a most remarkable transitional aspect: It has a perfectly formed plastron yet no carapace. Odontochelys only presents the dorsal midline of the neural plates of the carapace, that are close to the neural spines but remain separate (which is not the case in more derived turtles).Lets briefly recall what some evil saltationists (paleos and evo-devo's) have said about this. I remember Bob Bakker's book "The dinosaur heresies" (1986). There, he mentions the fact that in turtles the pectoral girdle is actually under the ribs, and points out that this qualitative aspect is hard to imagine to have occurred in more than a single step.
What can development tell us of all this? First, the plastron is derived from the neural crest, unlike the carapace, which is derived from a mixture of dermal bone and ribs. Second, the plastron ossifies before the carapace. Odontochelys reveals that this embryological and temporal separation also reflects a phylogenetic sequence. Scott Gilbert (yes, the book guy) points out that in turtles, the ribs have shifted dorsally, to developing within the dermis, a unique trait within amniotes. If an embryonic rib is experimentally inserted in the dermis of a chicken embryo, the result is ossification
of the dermis surrounding the rib. Because of this paracrine effect on the dermis, Gilbert hypothesized that a single-step shift of the ribs to the dermis could have induced the origin of a well-formed carapace.Some regard this hypothesis as incompatible with the hypothesis that an exoskeleton of separate dermal bones preceded the origin of the carapace. This incompatibility in my opinion is not quite so; dermal bones could have existed or not previous to the shift of the ribs closer to the dermis; the shift could have led to a single carapace. Critics to Gilbert's hypothesis have pointed out that in the carapace of the early (very fragmentary) triassic turtle Chinlechelys, ribs are not "immersed" in the carapace but run immediately below the surface of the dermal plates. However it is possible that this was sufficient for the paracrine effect leading to a single carapace "shell". Unfortunately we cannot know if the pectoral girdle was already under the ribs in Chinlechelys.
Even admitting the possibility of previous ostederms, Odontochelys is certainly something unexpected from the more "gradualist" perspective, which was "hoping" early stages of dermal armor would go back to remote Pareiasaur-like ancestors (see figure below). The full plastron of Odontochelys is pretty derived, yet this species has no "coat" of osteoderms.

References:
Li C, Wu X-C, Rieppel O, Wang L-T, Zhao L-J (2008) An ancestral turtle from the Late Triassic of southwestern China. Nature 456: 497-501
Joyce WG, SG Lucas, TM Scheyer, AB Heckert, AP Hunt (2008). A thin-shelled reptile from the Late Triassic of North America and the origin of the turtle shell Proceedings of the Royal Society B DOI: 10.1098/rspb.2008.1196
Cebra-Thomas JA, Betters E, Yin M, Plafkin C, McDow K, Gilbert SF. 2007 Evidence that a late-emerging population of trunk neural crest cells forms the plastron bones in the turtle Trachemys scripta. Evol Dev. 9(3):267-77.
Cebra-Thomas J, Tan F, Sistla S, Estes E, Bender G, Kim C, Riccio P, Gilbert SF. 2005. How the turtle forms its shell: a paracrine hypothesis of carapace formation. J Exp Zoolog B Mol Dev Evol. Nov 15;304(6):558-69.
miércoles, noviembre 19, 2008
Paedomorphosis vs Adaptacionismo
Muchos habrán escuchado sobre uno de los rasgos más llamativos que presenta la paedomorphosis en la evolución de los seres humanos; si observamos un feto de 7 meses del chimpancé, vemos que presenta una distribución del pelaje como la de un ser humano, con el pelo concentrado sobre la cabeza. La verdad es que había escuchado este dato e incluso había visto un dibujo de la cabeza pero la verdad es que no existe reemplazo para una foto. Finalmente he encontrado una en la web, que originalmente fue publicada en el libro "The life of primates" de Adolph Schultz, (1969). Esto me ha permitido salir de algunas dudas. Puntualmente, hay pelo en la barbilla y los labios, como en el adulto humano; sin embargo, a diferencia del adulto humano, no hay pelo sobre los genitales. Aún me queda la pregunta de si hay pelo o no bajo los brazos. Otra novedad es que se observan cejas muy claramente demarcadas, que luego desaparecerán completamente (ver imagen a la izquierda). Notable!Es curioso que, pese a que este dato se conoce desde hace ya bastante tiempo, aún se discuten diferentes hipótesis adaptacionistas para explicar la concentración del pelo sobre la cabeza del ser humano; la más
popular es que esto evolucionó por selección para correr bajo el sol por largas distancias, lo cual, supuestamnete, le permitiría tener un cuerpo "refrescado" a la vez que se protegía al maratonista de la Sabana de la intensidad de los rayos del sol. Otras explicaciones citaban una supuesta menor vulnerabilidad a los parásitos, con selección sexual para explicar la permanencia del pelo sólo en la cabeza. Ninguna de estas hipóestis parece enterarse del hecho de que esta distribución se originó en la etapa fetal, donde claramente ninguno de estos factores fue relevante. Lo más gracioso es que, al confrontar a los adaptacionistas con este hecho (en discusiones en los blogs), tristemente no logran concederle ninguna relevancia; es una mera "coincidencia". No hay mejor ejemplo de cómo la ideología produce una cínica miopia intelectual incluso con los datos más evidentes. Hay quienes no se enterarían de la realidad aún si ésta les vomitase en los zapatos.
viernes, noviembre 07, 2008
¡Ya era hora!
¿Qué pasa cuando controlamos adecuadamente si hay fenotipo asociado a las sustituciones nucleotídicas "positivamente seleccionadas"?
Un comentario recientemente publicado en PNAS menciona un interesante estudio reciente de rhodopsinas que absorben diferentes longitudes de onda en muchas diferentes especies de peces que viven a diferentes profundidades o tienen diferentes conductas relacionadas con la luz. Se caracterizan muchos cambios no sinónimos que afectan la longitud de onda que absorben las rhodopsinas y que se corresponden con ele stilo de vida de cada especie de pez (es decir son "adaptativas"; véase este post previo sobre este tema ). Resulta una instancia idónea para poner a prueba de manera biológica la famosa "prueba estadística" de la selección positiva. Nos dice Austin Hughes:
"In fact, the results showed that the codon-based methods were 100% off-target. When Bayesian methods were applied to a set of closely related rhodopsin sequences, eight sites were identified as ‘‘positively selected.’’ Yet not one of these sites was among the 12 sites known to be involved in adaptive changes in rhodopsin sensitivity. Moreover, amino acid changes at these sites were shown experimentally to have no effect and thus almost certainly to lack any adaptive significance.These results support the theoretical prediction that, because of the faulty logic in their underlying assumptions, codon-based focus mainly on statistical artifacts rather than true cases of positive selection"
Hughes concluye:
"In recent years the literature of evolutionary biology has been glutted with extravagant claims of positive selection on the basis of computational analyses alone, including both codon-based methods and other questionable methods such as the McDonald-Kreitman test. This vast outpouring of pseudo-Darwinian hype has been genuinely harmful to the credibilit y of evolutionary biology as a science. It is to be hoped that the work of Yokoyama et al. will help put an end to these distressing tendencies."
Ya era hora!!
El comentario de Hughes está en el grupo yahoo decenio (PNAS 2008Hughes). Tienen que leerselo...acá sólo puse una fracción de sus demoledoras críticas.
Refs
Austin L. Hughes. The origin of adaptive phenotypes. PNAS 2008 105:13193-13194
lunes, octubre 20, 2008
It's the SAME cell environment, stupid
slap in the face to epigenetics, the experiment describes what happens with some indicators of "gene expression" of human chromosome 21 in mouse hepatocytes; that is, human c21 has been incorporated into the genome of an experimental line of mice. They find that things such as the binding site of several transcription factors, and the general levels of transcription on the chromosome, are for the most (but not entirely) the same as in human hepatocytes. Their conclusion? The sequence of the human C21, rather than the epigenetic cell environment, is mostly responsible for "regulation" of its own expression. Hence, "It's the sequence, stupid".But, is it? It is well-known that all cells within the body contain the same sequence, but express very differently in different cell types, because of the different cell environments. It is interesting that the people at Science managed to wash this fact out of their brains, since it directly refutes that expression is determined in the sequence. Further, their conclusion is simply not logical because they are comparing cells with the exact same cell phenotype. The image shows micrographies from two liver sections; one is from mouse, the other is from human. Can anyone tell me which is which? The fact is, at the cell-histological level, most homologous tissues of mouse and human are undistinguishable.
Don't expect virtually identical cells to produce great differences in the expression of the same sequence just because you are comparing them in different species. Expect them to produce virtually identical gene expression. As simple as that.
Refs:
Wilson, M.D., Barbosa-Morais, N.L., Schmidt, D., Conboy, C.M., Vanes, L., Tybulewicz, V.L.J. Fisher, E.M.C., Tavaré, S., and Odom. D.T. 2008 Species-Specific Transcription in Mice Carrying Human Chromosome 21. Science 322: 434-438
Coller HA, Kruglyak L. 2008 Genetics.It's the sequence, stupid! Science. 322:380-1.
UPDATE
Check out this site on hepatocyte histology
Left is pig; right is raccoon
Phenotypic plasticity: This is mouse, fasted and glycogen-enriched
And of course, human (from another site):
lunes, octubre 06, 2008
Homeosis en dedos de dinosaurios

Estimados, los que me conocen ya saben que el asunto de las homeosis me gusta, y por varias razones (no sólo por las razones freaky-estéticas de ver una mosca con patas en la cabeza). Otras buenas razones son: 1) que demuestran la posibilidad de que distintas partes en el cuerpo de un embrión pueden cursar la misma vía epigenética 2) que muchas son eventos de transformación cualitativa, un sólo evento que no encaja con la noción de "acumulación selectiva" (véase esto y esto) 3) que muchas veces no tienen absolutamente ninguna consecuencia adaptativa que no sea rebuscada y poco creíble 4) que son demostrablemente ubicuas en la evolución cuando se hacen comparaciones filogenéticas (véase por ejemplo esto)
En este sentido durante los últimos tres años lejos de chile (felizmente ya estoy de vuelta) me he dedicado al tema de la inferencia de un "desplazamiento homeótico" que habria ocurrido en la evolución del ala de las aves, tal que los dedos 1,2 y 3 comenzaron a desarrollarse a partir de las condensaciones cartilaginosas que en otros amniotos se convierten en los dedos 2,3 y 4; este evento sólo puede concebirse como algo de un sólo paso, y su valor adaptativo está lejos de ser comprensible. Cabe recordar que existen publicadas opiniones adaptacionistas que pese a la contundende evidencia de la filogenia y de la embriología, morfología y expresión genética comparadas, han puesto en duda la ocurrencia de este evento sólo porque no tendría valor adapataivo, o peor aún, se ha dicho que este tipo de cambio requeriría mutaciones con efectos pleiotrópicos carcameativos que deteriorarían seriamente el fitness.
Bueno, pues a la pamplina panadaptacionista hay que responder con comparaciones filogenéticas bien hechas, nada más. Donde manda cladograma, no manda la especulación adaptacionista (tendencia que se impone, duélale donde les duela a los ecólogos evolutivos más "clásicos")
Así es como con gusto les presento mi más visible publicación hasta el momento, gratis para la descarga de Ud, familia y amigos, en PLoS ONE (journal de libre acceso que rápidamente se ha perfilado como el "nature de los pobres")
Sin más, les dejo el link para que los más curiosillos se lean este simpático ( y no muy largo!) artículo.
Saludos,
Alexander Vargas (aka Sander)
Selected Trackbacks:
ScienceDaily
Visualizing evolution
Awesome Science
Joe's random science blog
Talk rational
Hoxfulmonsters
Dinopantheon
Ornithomedia
LivedoorBlog
BeheFails
Faktaevolusi (Indonesia!)
Blog TCU
Electrónica Fácil (al fin algo en español)
lunes, septiembre 22, 2008
Más sobre filogenia animal: el mundo de las placas
Ya reclamábamos en este blog por la falta de los legendarios Placozoa en los "grandes muestreos gran" de filogenómica animal. Los placozoa, han sido tildados de animal ancestral mientras que otros han insitido en que se trata de una simplificación secundaria. A mí me ha parecido siempre que sí, que es un linaje antiguo; los tipos celulares que presenta son más o menos típicos de phyla basales de animales (incluso el aparato de actina-miosina de células contráctiles de placozoa pre-existe en "protozoa") Las dos capas celulares
de placozoa, ventral y dorsal, son notablemente diferentes. La condición de dos capas diferenciadas con un espacio al medio la vemos además en larvas de esponjas y tampoco es muy diferente a lo que se ve en la larva plánula de cnidarios. Otto Bütshcli en el sigo XIX, probablemente usando la más pura doctrina recapitulacionista, había adivinado (cuevazo más o cuevazo menos) una "plakula" ancestral y su invaginación en una gastrea antes de que se descubriera a los placozoa y su particular forma de invaginarse.Podemos decir que los placozoa son una simplificación a partir de la larva de un animal más complejo, una esponja o cnidarios; o podríamos decir que se trata del metazoo más primordial conocido, cuyo perfil persiste en el embrión temprano de la ontogenia de los demás grupos (incluso blástula y gástrula temprana de bilateria).
En mi opinión las dos ideas contienen semilla de verdad. Consideremos la propuesta (aún vigente) el origen coanozooide de los
primeros metazoa, que va de la mano con la idea que los porifera serían parafiléticos, es decir, descendemos de las esponjas (Oh dioses del NSF: secuenciad esponajas hexactinélidas, YA!!!). Si todo eso está en lo correcto, entre un "coanozoa" colonial filtrador y esponjas, quizás no hay mucho lugar para una etapa placozoaria.Donde sí p
arece haber más espacio, es en la transición de esponjas a epitheliozoa. Los adultos son muy diferentes, pero las larvas son parecidas; pueden descender los unos de los otros por vía de un estado paedomórfico en que la larva es el adulto.... exactamente, como placozoa. Y ESTE ancestro placozooide, ahora sí que sí, persistiría al más puro gusto de Haeckel en las plánulas y blástulas de la ontogenia de los cnidarios y bilateria.Y cómo anda todo esto con las grandiosas nuevas filogenias moleculares? Pues no tan mal, sin bien los infaltables agujeros en el muestreo taxoómico aún dejan las cosas medio inestables. Tenemos este trabajo reciente, altamente publicitado, basado en genomas completos:

Aunque placozoa sale como grupo hermano de epitheliozoa, todavía me aguantaré de saltar en una pata, debido al defectuoso muestreo taxonómico (La ínica esponja muestreada es una demospongita, Amphimedon. Monosiga es un coanoflagelado, Lottia es un grastrópodo. Nótese que con este muestreo no hay forma de descartar que los placozoa sean la larva paedomoórfica de una esponja. Esa hipótesis sigue vigente
Esta filogenia reciente de los coanozoa en cambio tiene un rico muestreo taxonómico y viene a confirmar con bastante seguridad que los coanoflagelados son el grupo hermano de los metazoa.

Referencias:
Srivastava, M., Begovic, E., Chapman, J., Putnam, N.H., Hellsten, U., Kawashima, T., Kuo, A., Mitros, T., Salamov, A., Carpenter, M.L., Signorovitch, A.Y., Moreno, M.A., Kamm, K., Grimwood, J., Schmutz, J., Shapiro, H., Grigoriev, I.V., Buss, L.W., Schierwater, B., Dellaporta, S.L., Rokhsar, D.S. (2008) The Trichoplax genome and the nature of placozoans. Nature 454:955-960. [doi:10.1038/nature07191]
Shalchian-Tabrizi K, Minge MA, Espelund M, Orr R, Ruden T, et al. (2008) Multigene Phylogeny of Choanozoa and the Origin of Animals. PLoS ONE 3(5): e2098. doi:10.1371/journal.pone.0002098
P.D. Hagamos un nucleo decenio de carne y hueso!! Sanders en Chile Lunes 29 de Septiembre, lo trae mote con huesillos light
sábado, septiembre 06, 2008
Palau update
Resulta que el paper del hombre de Palau era increíblemente mula. Ni siquiera las afirmaciones básicas sobre tamaño corporal y cerebral eran confiables, sino que estaban basadas en materiales demasiado fragmentarios e inferencias mal hechas. En resumen, el "hombre de Palau" es biológica y arqueológicamente igual a los seres humanos de la zona.Cuando se publicó el paper del hombre de Palau, cometí el grave error de confiar en que las afirmaciones morfológicas (menor tamaño y microcefalia) eran correctas; sin embargo igual me indignó la baja calidad del paper en cuanto a cómo sustentaban sus afirmaciones filogenéticas. Dejé mi comentario al pie del paper en PLoS ONE, en este post, y en otros blogs. Ahí contestó John Hawks (revisor 1 de 2, el único a favor del paper de palau) explicando que los materiales eran insuficientes para un análisis más formal. Resulta que ni siquiera eran suficientes para determinar enanismo o microcefalia: como bien lo dice el título de este otro paper: "Small scattered fragments do not a dwarf make"
John hawks, dicho sea de paso, el "experto en evolución humana" (U. Wisconsin, que publica en PNAS) y que dió el ·"OK" a este trabajo (pese a la oposición del otro arqueólogo revisor) se dedica principalmente a detectar selección de genes a nivel de comparación de estructuras poblacionales y a nivel de secuencia primaria. Las explicaciones evolutivas que le gustan son fundamentalmente reduccionsistas- adaptacionistas, del corte preciso de la escuela de "psicología evolutiva", totalmente mulas: por ejemplo, "las enfermedades y miserias de la agricultura son responsables de enorme seleccion natural de genes en los últimos 5000 años" "tenemos microcefalinas con secuencias raras que heredamos de cruzas esporádicas con neandertales, y que han conferido enormes ventajas selectivas a sus poseedores". Sus coautores incuyen algunos que han argumentado que ha habido selección de genes para mayor inteligencia en judíos. En fin...sigo? Ciencia "de la buena"
Imagen de un hombre de Palau posando junto a sus descubridores de national geographic cinema corporation, quienes se defendieron "sí es un enano, lo que pasa es que es un enano gigante"
miércoles, septiembre 03, 2008
Homologia e conservação hierárquica de estruturas
simple computer search for sequence similarity, nothing will be
found. In 1992 Bork et al.(8) used a sophisticated structure-
based sequence alignment, and they discovered that bacteria
did have genes related to actin. Actin is a member of a larger
superfamily that includes sugar kinases, the chaperone
hsp70, and the actin subfamily. These three subfamilies show
no recognizable sequence identity to each other in normal
pairwise alignments, but when the structures of hexokinase,
hsp70 and actin were determined by X-ray crystallography,
they were found to have virtually identical folding patterns.
Structural biologists interpret this to mean that the three
subfamilies evolved from a common protein ancestor.(9) Sugar
kinases and hsp70 were already known to exist in both
bacteria and eukaryotes because of their clear sequence
similarity: the bacterial proteins are 50 – 60% identical to their
eukaryotic homologs.(10) But the closest bacterial proteins to
eukaryotic actin showed less than 15% identity,(8) which is too
low for reliable identification. However, the more-sophisticated
alignment of Bork et al.(8) found three bacterial proteins that
appeared to be relatives of actin—FtsA, MreB and StbA (now
called ParM)"


A descoberta de proteínas homólogas a actina e tubulina em bactérias a partir de sua topologia - mas não de sua sequencia de nucleotídeos - nos mostra um ponto interessante em relação a dinâmica de transformação dos seres vivos. As transformações ocorrem de maneira hierárquica, ocorrendo de maneira semi-independente entre os diferentes niveis desde que conservada uma estrutura viável em cada nível. Ou seja, neste caso específico, as sequencias de nucleotídeos podem se transfomar desde que conservada as relações entre actina ou tubulina com outras moléculas, o que ocorre no nível das estruturas terciárias. Algo similar ocorre na relação entre conduta e morfologia. É comum que certas condutas, como o "bowing" em aves, se conservem em diferentes espécies apesar dos câmbios morfólogicos (e evidentemente, o revés é verdadeiro: mesmas morfologias permitem diferentes condutas). Também é o que ocorre em relação a formação das lentes nos olhos de anuros: em Rana fusca, como descrito por Spemann há mais de um século, a fomação das lentes no epitélio é induzida pela vesícula óptica. No entanto, em Rana esculenta não é necessário que ocorra indução. A mesma estrutura - um olho de Rana - é conservada apesar de transformações nos processos histológicos e moleculares.


Isto é essencialmente o que permite a ocorrência de "phenogenetic drift" - a morforfologia ou histologia é conservada, mas os processos moleculares subvernientes se tansformam. Eu, particularmente, prefiro não descrever este fenômeno como uma deriva do genótipo em relação ao fenótipo, como sugere o termo phenogenetic, pois isto presupõe um genótipo que determina um fenótipo. Seria preformacionista, pois supõe que a estrutual inicial determina as transformações durante a ontogenia, e reducionista pois supõe que os diferentes níveis de organização são controlados pelo nível molecular. Prefiro encarar todos estes fenômenos como uma deriva estrutural onde um nível pode se transformar desde que conservada sua operacionalidade e desde que sua realçao com os outros níveis não interrompa a operacionalidade destes.

De Beer, G. Homology, an unsolved problem, v.74. 1971
Erickson, H. P. Evolution of the cytoskeleton. Bioessays, v.29, n.7, p.668-77. 2007.
Weiss, K. M. e S. M. Fullerton. Phenogenetic Drift and the Evolution of Genotype–Phenotype Relationships. Theoretical Population Biology, v.57, n.3, p.187-195. 2000.