viernes, abril 25, 2008

Es un pollo...¿un avestruz? ¡No! ¡Es colágeno de Tyrannosaurus!

Al fin tenemos una filogenia molecular que evalúa si las aves son más cercanas a los dinosaurios que a los cocodrilomorfos como indica la cladistica morfológica. Nótese además que se incluyó colágeno de un mamut. La única anomalía en todo el árbol es la posicón de Anolis un nodo demasiado hacia afuera (deberia ser grupo hermano de archosauria, no de amniota). Nada de mal para dos proteínas incompletas!!

"These results support the endogenous origin of the preserved collagen molecules and confirm the prediction based on morphology that, if biomolecules could be retrieved from a nonavian dinosaur, they would share a higher degree of similarity with birds than with other extant vertebrates. Our findings suggest that molecular data from long-extinct organisms
may have the potential for resolving relationships at critical areas of the vertebrate evolutionary tree that have, so far, been intractable. The findings presented here also bolster the use of morphology in phylogenetics because our results are consistent with studies on the evolutionary relationships of fossil forms that rely on morphology"

Rara vez vemos explicitas declaraciones pro-morfológicas en un trabajo molecular....disfrutemos estos cinco segundos jajaja.

Organ CL, Schweitzer MH,Lewis CC, Asara JM 2008 Molecular Phylogenetics of Mastodon and Tyrannosaurus rex. Science 320: 499

miércoles, abril 23, 2008

El problema de nuestro tiempo (aún)

La falacia principal de nuestros tiempos es la idea de que la plasticidad fenotípica está genéticamente determinada o el oxymoron de los "genes de la plasticidad fenotípica".

Esta forma de pensar está perfectamete representada en la siguiente respuesta que me dio un colega ecofisiólogo en la internet:

"Say I have a population of lizards. I take half the population and move it North . Some decades later I return and do some comparative demography. I find that the Northern population grows more slowly, has a later age of first reproduction, smaller clutch sizes, maybe even larger eggs and hatchlings. Seemingly important life-history differences no? Different phenotypes.
Now I take representatives of both populations and run a common-garden experiment. Lo and behold, all those differences disappear--they were all due solely to phenotypic plasticity. Has evolution occurred in generating those differences? I (and I think most) would say no; I get the impression that you would say yes. The plasticity was already built into the original population's genome"

Según esta mentalidad, ningún fenotipo inducido epigenéticamnte sería jamás un nuevo fenotipo. Esto no hace ningún sentido estructural: cualquier sistema con estructura, sea o no sea vivo, puede deformarse producto de una interacción con el medio, generando un nuevo "fenotipo" sin que éste haya sido ensayado o preexistido de manera alguna. Los seres vivos son tan determinados en su estructura, como todo lo demás; difícilmente podrán escaparse a esta lógica.

Sin embargo, desde la perspectiva neodarwinista esto es una respuesta adaptativa que no es más que la expresión de una "maquinaria regulatoria", previamente ensayada y perfeccionada por la selección para producir una "respuesta adecuada" ante determinada variación ambiental. HE AHÍ cuando ocurrió la verdadera "evolución". En los ojos del darwinista, la evolución de esta maquinaria adaptativa habría ocurrido por un "típico" proceso de selección natural de rasgos heredables. Se trata de la seleccion de genes que regulan la plasticidad fenotípica. Instancias como la observada en el ejemplo de la lagartija no implican selección de genes y no tendrían ninguna relevancia evolutiva; son la mera expresión del estatus de los "genes de plasticidad" en la población original. Un caso como este, de modificación del fenotipo individual por el ambiente, no tiene relevancia evolutiva porque no es capaz de heredarlo a su progenie; depende del estímulo ambiental.

Los neodarwinistas "reformados", que intentan ser epigenéticos a la vez que se centran en los genes, consideran que en la asimilación genética, se favorecen los genes que logran desarrollar un rasgo con menor o ningún estímulo ambiental. Por ejemplo: Pigliucci considera que en el experimento de Waddington , se seleccionó un umbral más bajo de estímulo ambiental para el desarrollo del fenotipo crossveinless. Sin embargo, la idea de que sencillamente se seleccionan "genes de plasticidad" pierde de vista el hecho de que es necesaria la modificación ambiental del fenotipo individual. El hecho es que Waddington jamás seleccionó para la capacidad de desarrollar un fenotipo con menor o poco estímulo (aunque observemos esta capacidad en su población "final"). No es así. Waddington siempre ocupó el mismo estímulo ambiental, no lo fue "suavizando" Al comienzo del experimento de waddinton, NADIE es capaz de desarrollar el fenotipo sin el estímulo ambiental (De haber existido individuos así, daría lo mismo aplicar el estímulo ambiental al comienzo o al final: tiene que ser al principio). Waddinton simplemente eliminó durante generaciones a toda mosca que fallara en desarrollar el fenotipo crossveinless,ante siempre el mismo estímulo. Luego de algunas generaciones retiró el estímulo y vio que ya no era necesario; habían moscas que desarrollaban el fenotipo de todas formas (sin embargo, si ahora retiraba su guillotina selectiva, en pocas generaciones el rasgo vuelve a ser ambiente-dependiente)

No todas las moscas respondían al shock térmico. Una diferencia genética puede "decidir" si ocurre o no un cambio de fenotipo ante un determinado estímulo ambiental. Pero el hecho sigue siendo que sin el estímulo ambiental no hay cambio fenotípico. Los genes pueden ser necesarios, pero no suficientes. Hacen posible un fenotipo sin determinarlo (M&M). Hablar de"genes de plasticidad fenotípica" ignora la influencia estructural del cambio ambiental.


En términos de Sober, es posible decir que Pigliucci confundió "selection of" con "selection for". La independencia del estímulo ambiental (umbral=0) es la consecuencia tras algunas generaciones, pero no es lo directamente seleccionado: Waddinton sólo seleccionó un FENOTIPO).

Sin shock térmico, no hay variación alguna sobre la cual seleccionar; a esto se refieren los que dicen que el cambio ambiental "libera" variación genética oculta. Volvemos a la observación que han hecho Mary Jane, Kammerer, ganaderos y corraleros varios: no se puede seleccionar para mayor respuesta al ambiente, sin modificación ambiental del fenotipo individual. Una mejor vaca lechera sólo puede comprobarse mediante ordeñarla profusamente; una selección para pollos de mayor tamaño se acompaña de elevadas cantidades de alimentos (no se puede observar máximo crecimiento si el alimento está siendo limitante) .
Estos procesos de selección artificial, incluyendo el experimento de Waddington, tienen incorporados nada menos que un paso de modificación ambiental del fenotipo individual. Si la induccion ambiental de un fenotipo inicialmente NO HEREDABLE es un paso ineludible, incluso en una situación TAN amigable a la perspectiva darwinista como lo son los experimentos de selección artifical....con qué cara nos van a decir después que los cambios fenotípicos no heredables no tienen relevancia evolutiva?

-Alexander Vargas

domingo, abril 13, 2008

Padrões filoepigenéticos no registro fóssil

O post passado discutiu a evidência de transformações filoepigenéticas a partir de processos observados nas patas de terópodos. Comparando as estruturas de fósseis e os processos ontogenéticos observados em linhagens derivadas é possível inferir a natureza epigenética das inovações evolutivas (suponho que a diminuição do quarto trocanter poderia também ser uma conseqüência epigenética da diminuição da musculatura caudal).
Contudo, poderia o padrão observado no registro fóssil nos dizer algo sobre eventos de transformações filoepigenéticas? A paleobióloga Elizabeth Vrba acredita que sim. O registro fóssil muitas vezes apresenta padrões de mudança paralelas em espécies relacionadas. A explicação usual deste padrão apela à ação externa da seleção natural. Pressões seletivas semelhantes selecionam variações semelhantes e moldam organismos similares. No entanto, Vrba prefere uma hipótese mais desenvolvimental, baseada no fato de que espécies relacionadas tendem a apresentar interações morfogenéticas similares com o meio. Vrba, como boa paleobióloga, se concentra em variações heterocrônicas e chama sua hipótese de “pulsos heterocrônicos”. Resume sua proposta em dois pontos:

1. Similar environmental changes elicit similar heterochronies in parallel, potentially in numerous lineages across large phylogenetic groups. Such heterochrony often involves change in body size and may be accompanied by large-scale phenotypic reorganization (Alberch 1980; Arnold et al. 1989; Vrba 1998), such that the parallel heterochronies involve concerted evolution of suites of linked characters and “shuffling” among body proportions.

2. At times of widespread climatic change, diverse lineages may show parallel changes in size and in similar kinds of heterochrony associated in time and consistently with the climatic change—a “heterochrony pulse.” “Pulse” here does not imply that the lineages responded in unison in a short time, but only that the events are significantly concentrated in time.

Vrba discute exemplos de seu grupo preferido: mamíferos. Ela parte de dados paleobiológicos que mostram que a diminuição da temperatura média está relacionada com o aumento do tamanho corporal médio em espécies de mamíferos. Segue discutindo os dados biogeográficos e macroecológicos que mostram que espécies e subespécies relacionadas apresentam a mesma a relação inversamente proporcional entre tamanho do corpo e temperatura ambiental. Por exemplo, diversas subespécies florestais de mamíferos africanos são menores e possuem uma taxa de crescimento mais rápida do que as subespécies de distribuição subtropical ou de altitude elevada.


Búfalo africano comum e acima a pequena subespécie florestal

Um interessante exemplo citado por Vrba é a aparição paralela de diversos roedores bípedes no Oligoceno. Como visto no post anterior, os membros de tetrápodos são altamente sensíveis às condições em que se desenvolvem. Roedores bípedes se caracterizam pelo aumento pedomórfico do tamanho dos pés das patas traseiras (o que facilita a postura ereta). Tal modificação ocorreu paralelamente em vários gêneros durante o resfriamento e desertificação da América do Norte. Ao invés de um caso extremo de convergência levando à adaptações análogas, este conjunto de evidências leva Vrba a apostar em um pulso heterocrônico devido a respostas desenvolvimentais similares em ambientes comuns. Mais frio, menor taxa de crescimento, diferentes proporções alométricas, diferente motilidade embrionária e... voilà: um concerto filoepigenético entre diferentes espécies!


Hafner, J. C., and M. S. Hafner. 1988. Heterochrony in rodents. Pp. 217–235 in M. L. McKinney, ed. Heterochrony in evolution: a multidisciplinary approach. Plenum, New York.

Vrba, E. Mass turnover and heterochrony events in response to physical change (in Macroevolution; diversity, disparity, contingency; essays in honor of Stephen Jay Gould)
Paleobiology (June 2005), 31(2, Suppl.):157-174

miércoles, abril 09, 2008

Deep-time dinosaur phyloepigenetics

West-Eberhardt repeatedly mentions in her book the case of the two-legged goat, born with no forelimbs, that learned to walk bipedally, and developed several hip traits, bipedal "adaptations". Certainly, to understand the development of these hip adaptations, we would be ill-advised to concentrate on the molecular mechanisms underlying cell-death in the embryonic forelimb, who have only indirect "causation", far removed from the actual mechanisms involved in the largely non-genetic influence on this trait. Comprehension can only come from observing the higher-level interactions and the direct developmental effects of emerging epigenetic interactions. It is interesting to think just how many aspects of our phenotype are, like this, only very indirectly related to the genotype (from a systems view, a mutation can be nothing but a "trigger").

I still remember when it dawned upon me in 2001; ALL vertebrate limbs, universally, grow longer with mechanical stimulation and use. I thought about early theropod dinosaur's reduced forelimbs. Even if bipedality were the result of some mutation enlarging legs or shortening arms (by the way: probably not, but behavioral), the arms would receive less mechanical stimulation when relieved from locomotion, whereas the legs now bear the entire body's weight. There is no way this is not going to decrease growth in the arm , increase it in the leg, and enhance forelimb-hindlimb size differences. Enter here the field of phyloepigenetics, which we previously named on this blog; the recopilation of cases of epigenetic explanation of evolutionary differences. This time I present a case of a deep-time epigenetic apomorphy: The fibular crest of the tibia of Theropod dinosaurs and their living representatives, the birds. Here are some photographs of this rectangular crest, that extends from the large tibia onto the thinner fibula (both elements of the "shank" or zeugopod). Since this is a trait of all theropods, the fibular crest must be at least 230 million years old. Two different birds species illustrating the fibular crest of the tibia, upwards, rectangle-shaped (from Müller and Streicher 1989)


The fibular crest is an apomorphy of theropod dinosaurs. On the left, a theropod; right, a non-theropod dinosaur (Müller and Streicher 1989)

It turns out that this crest is a sesamoid bone, that is, a bone that develops within connective tissue as a result of mechanical stimulation; first cartilage is formed in the stimulated region; this cartilage may thereafter ossify originating the sesamoid bone (The chicken patella and human knee-caps are sesamoid bones that develop from within tendons). We can say that the sesamoid bones are to connective tissue what callosities are to epidermis. All of this with plenty of experimental confirmation, such as mechanical forces in abnormal places, etc.
The fibular crest of the chicken develops as a cartilage in the narrow space between the tibia and the fibula. In theropod evolution the fibula became thinner; this may be the reason why muscles that in other reptiles pull the leg backwards and project exclusively onto the fibula, in the chicken embryo also hit the connective tissue between the fibula and the tibia, provoking the development of a new sesamoid cartilage. This cartilage therafter ossifies into the crest, tightly connecting the tibia and the fibula in the adult. This crest in birds is certainly "adaptive" since it is fundamental to have a functional leg (because the fibula in birds no longer connects distally to the foot!) Yet against the adaptationist intuitions of old-style lamarckism, or of reformed "epigenetic darwinists", nothing in all those millions of years has produced a mechanism for developing this bone without movement. It still relies on the same "good old" mechanical stimulation. If the embryo is paralized , for instance, with a postsynaptic blocker, the cartilage of the fibular crest is no longer formed. The unavoidable effects of higher-level interactions have remained the basic mechanism by which this trait is developed .


From Müller 2003

The authors of the study share some wisdom with us:

"The de novo formation of skeletal elements addresses an important but largely neglected issue in evolutionary theory: the origination of morphological novelty. This generative problem of organismal evolution is sidestepped in traditional accounts that focus on the gradual variation and adaptation of characters and calculate their population genetic underpinnings. The studied characters are usually taken as given, and their origination is tacitly assumed to be based on the same mechanisms as their variation and adaptation. There is growing awareness that this does not need to be the case and that innovation should be treated as a distinct problem of
evolution"

Müller GB and Streicher J. 1989. Ontogeny of the syndesmosis tibiofibularis and the evolution of the bird hindlimb: a caenogenetic feature triggers phenotypic novelty. Anat Embryol. 179: 327-339

Müller GB. 2003. Embryonic motility: environmental influences and
evolutionary innovation. Evol & Dev 5:1, 56–60

domingo, abril 06, 2008

Espículas

Algunos post atrás se nos invitó a buscar casos de Phyloepigenetics o como diferencias entre especies pueden surgir por apomorfías epigenéticas. Aunque no sé si el siguiente caso sirva para ilustrar lo anterior debido a que no se trata de nivel de especie, si nos muestra la diversificación de clados (a nivel de clase) por lo que parece ser un mecanismo epigenético. Espero lo vean como lo entendí yo y les guste este caso.

Como es bien sabido por todos las esponjas (Porifera) están divididas en tres clases: Las esponjas calcáreas caracterizadas por espículas de carbonato cálcico, las hexactinellidas o esponjas vítreas con espículas de sílice y que se caracterizan por la presencia de seis puntas en tres ejes (lo que da origen al nombre del grupo por las espículas hexactinas –seis puntas-) y las más diversas y conocidas demosponjas que pueden contar con un esqueleto de espículas silíceas y/o fibras de espongina, una cuarta clase puede ser considerada dentro de las demosponjas por no ser monofiléticas las sclerosponjas caracterizadas por espículas silíceas y fibras de espongina sobre un esqueleto de carbonato cálcico.

En particular, las hexactinellidas y las desmosponjas pueden ser consideradas más estrechamente relacionadas entre sí que con las esponjas calcáreas, compartiendo por ejemplo, el poseer espículas silíceas.

Centremos nuestra atención en las espículas: las megascleras o espículas grandes que todos hemos conocido en el laboratorio se clasifican por ya sea el número de ejes, de acuerdo al sufijo –axon o por el número de puntas con el sufijo –actina.

Ahora, como bien se dijo las hexactinellidas se caracterizan por poseer solo espículas silíceas de seis puntas (que una vez más, le da el nombre al grupo) mientras que en las demosponjas se presentan espículas monoaxónicas o tetraxónicas nunca triaxónicas o hexactinas (tener tres ejes involucra seis puntas).


Del mecanismo por el cual se forma una espícula se conoce que por medio de la expresión intracelular de un filamento de la enzima silicateína empieza a depositarse alrededor de este el sílice, cuando la primera capa está completa es excluido de la célula donde extracelularmente es completada.

Lamentablemente el modelo usado en este estudio de Müller et al (2006) solo usaron una esponja demosponja que produce espículas monoaxónicas, sin embargo, en los textos se describe el mecanismo de formación de una espícula megasclera triactina como: segregada por tres esclerocitos que derivan de un amebocito, denominada excleroblasto. Los tres esclerocistos se fusionan parcialmente para formar un triplete de células. Luego cada miembro del triplete se divide y entre cada par de células hijas se fabrica una punta o radio. Las tres puntas se fusionan por sus bases. Cada uno de los tres pares de esclerocitos se desplaza en seguida hacia fuera a lo largo del radio de tal forma que una célula segrega el extremo y la otra engruesa la base de la espícula (según nuestro amigo Barnes).

En conclusión si una de las características más determinantes que distingue Hexactinellidas y Demospongias son el tipo de espículas triaxónicas hexactinas para las primeras y monoaxónicas y tetraxónicas para las segundas nunca triaxónicas. Y el mecanismo por el que se generan los ejes de las espículas es un mecanismo físico entendido como el actuar conjunto de un triplete de células que secretan la espícula con la ayuda de la silicateína (un menage a trois de esclerocitos). ¿Qué subyace en que un grupo se junten los seis esclerocitos que generarán una espícula de seis puntas y en el otro no? ¿Podemos inducir a esclerocitos de demosponjas a formar espículas propias de las hexactinellidas simplemente agrupándolas?. Referencias al respecto no he encontrado pero seguiré buscando…
Referencias:
Müller et al 2006. Micron 37: 107 - 120
Barnes Zoología de los Invertebrados (el que todos conocen)

viernes, abril 04, 2008

Secuencialidad, ciclos de vida y la perspectiva sistémica de herencia

La observación crucial de la teoría de sistemas es que generalmente las propiedades de un sistema no son la suma aditiva de las propiedades de sus componentes. Al no ser una suma aditiva, no es conmutativa, es decir, la secuencia temporal en la que se encuentran una serie de componentes es determinante de resultados finales muy diferentes, como lo revela la más simple receta de cocina. De esto entonces podemos deducir que las secuencia de eventos y de encuentros son cruciales para los sistemas biológicos, cosa que vemos manifiesta en su organizada estructura topológica que conduce y canaliza secuencias de eventos y de encuentros, tanto al interior del propio organismo, como con respecto a su medio. Es por esto que la perspectiva sistémica, al describir la deriva estructural en la ontogenia de un ser vivo, o bien la evolución de un linaje particular , connota este proceso como un proceso sistémico-histórico, una dinámica en la cual la secuencia de los eventos es fundamental (importante intuición histórica que Kaufman no logra desprender desde su rudimentario y fallido "reduccionismo de sistemas").

En efecto, la conservación de la autopoiesis, y la conservación de un fenotipo ontogénico, implica simpre la conservación de una secuencia particular de eventos. En este punto es interesante contrastar este enfoque de secuencialidad en el tiempo con dos explicaciones clásicas al fenómeno de la herencia. Una, muy actual, sólo es capaz de concebir a la herencia mediante la noción del templado, es decir la famosa molécula autoreplicante del DNA. Los cambios se conservan porque quedan en el templado. A algunos parece incluso que les cuesta imaginarse cualquier otro mecansimo confiable de repetición. La otra explicación , vieja e inmortal, es relegar la repetición del fenotipo a la acción de alguna entelequia que como si de algún agente externo se tratara "guía" el desarrollo como en la ejecución de un plan (Las metáforas de programa y de teleonomía son en esencia lo mismo que la entelequia ya que no entregan mecanismos).


Ambas visiones son erradas y adolecen del mismo problema: Pasan por alto la relevancia de la repetición cíclica de secuencias de eventos distribuidas en el tiempo. Queda olvidado el ciclo de vida, una secuencia de eventos clausurada, que genera condiciones conducentes a su propia repetición.
Un cambio introducido en algún punto del ciclo de vida puede no tener ninguna consecuencia inmediata. Los efectos pueden manifestarse mucho después, en el surgimiento de la interacción relevante. El ciclo de vida no se repite a sí mismo por medio de un mecanismo directo e inmediato de templado y copia, ni por el constante influjo de alguna guía enteléquica, sino que al tratarse de un proceso dinámico distribuido en el tiempo, una "causa" o cambio puede encontrarse distanciada en varios pasos de su efecto, y aún así participar de la repetición del ciclo como totalidad y la repetición de sí misma. Se trata de un mecanismo epigenético de herencia.
Es frecuente en animales comprobar la importancia para la conservación de un determinado ciclo de vida del lugar en donde se depositan los huevos y la interacción con el medio en ciertas "ventanas" temporales. En el caso del salmón, varias señales aprendidas en su infancia le llevan después a reconocer y regresar al río específico donde nació; por ejemplo, si se reubica drásticamente a un salmón, jamás va a optar por otro río, y muere sin reproducirse. Nótese sin embargo que para que ocurra la concatenación cíclica de una secuencia de eventos no se requiere en principio de la participación de un sistema nervioso. Acordemente, los ciclos son una forma de repetir eventos y fenotipos que es común a toda la biología, y no exclusiva a los organismos con sistema nervioso. Incluso a nivel de la fisiología celular, muy pocas moléculas son directamente autocatalíticas o templados de sí mismas, sino que son producidas como resultado de pertenecer a una red cíclicamente concatenada. La autopoiesis es claramente una propiedad distribuida en la célula, una relación recíproca entre dinámica molecular interna y membrana, que no puede ser descrita como una relación de templado y copia como en el caso de la secuencia de ADN.


-Dr Sanders

jueves, abril 03, 2008

Dr. Pangloss, um equívoco antigo.


Como todos que freqüentam este espaço já devem conhecer, durante o auge do poder onipotente do neodarwinismo na década de 70, Gould e Lewontin (1979) fizeram uma crítica muito inteligente à essa postura apressada e teleológica de muitos cientistas em atribuir toda e qualquer característica biológica uma explicação adaptativa. A essa maneira única de se pensar, colocando a seleção natural como condição a priori, estes autores chamaram “o Programa Adaptacionista”, ou melhor ainda, Panglossionismo, comparando ironicamente os biólogos atuais ao Dr. Pangloss – o pior filósofo possível, personagem de Voltaire (Figura 1).


Bem, apesar deste tema não ser nenhuma novidade nos últimos 50 anos de biologia, eu tive uma surpresa ao encontrar uma discussão muito parecida em 1901. No livro “Regeneration” de TH Morgan, ele dedica um capítulo inteiro a discussão do tema Regenraiton and liability to injury. Nesta oportunidade ele discute a idéia de Weismann de que a regeneração seria uma característica moldada pela seleção natural. É que Weismann colocava que a regeneração ocorria principalmente em animais ou partes de animais mais sujeitas a injúria, e por esta relação, deveria ser uma adaptação em sentido darwiniano. Morgan se opunha ferrenhamente (a algumas vezes com desdenho pessoal**) à essa idéia e passa muitas páginas do livro dando exemplos em todos os filos animais mostrando que geralmente não há tal relação, apontada por Weismann, entre poder regenerativo e freqüência de injúria. Talvez o exemplo mais elegante seja sobre a regeneração que passa em todos os apêndices do crustáceo Eremita, independete se são os que permanecem externos (frequentemente quebrados) ou internos e protegidos pela concha (Figura 2).


O mais interessante é que Morgan critica fortemente duas posturas citadas como sendo de Weismann, que na verdade são críticas muito pertinentes ao neodarwinismo que se cristalizaria nas décadas seguintes.

- Primeiro Morgan reclama do que já seria uma expressão primitiva de Panglossionismo:

“So firm a hold has the Darwinian doctrine of utility over the thoughts of those who have been trained in this school, that whenever it can be shown that a structure or a function is useful to an animal, it is without further question set down as the result of the death struggle for existence. A number of writers, being satisfied that the process of regeneration is useful to the animal, have forthwith supposed that, therefore, it must have been acquired by natural selection”. (negrito do próprio Morgan).


- Em seguida, Morgan faz uma distinção que seria muito confundida posteriormente na doutrina neo-darwinista, entre a seleção natural (num sentido darwiniana, positiva), e uma mera restrição funcional:

“The advocates of such a view overlook a very vital part of the problem. If, for instance, it were found, as the result of a large number of observations, that those animals or parts of animals that were most subject to injury had most highly developed the power to regenerate lost parts, it would by no means follow, as Weismann and other Darwinians claim, that this result must have come about by what they call a process of natural selection. They overlook the possibility that unless these animals had from the beginning the power to regenerate they could not continue to live under the adverse circumstance... Many persons confuse this statement with the theory of natural selection, but the two views are as wide as the poles apart”.


** Sobre as idéias de Weismann, Morgan disse: “There are no facts that shown that this statement is not entirely imaginary”. O mesmo senso de humor de Gould e Lewontin (1979), sobre o Panglossionismo.

Abraços,
Gustavo


Referencias Bibliograficas

Morgan TH (1901) Regeneration. New York, MacMillan.

Gould SJ, Lewontin R.: The Spandrels of San Marco and the Panglossian Paradigm: A critique of the adaptationist programme. Proc Royal Soc Lond 1979; 205B (1161): 581-598.

sábado, marzo 29, 2008

Ecomorfología: la estructura supeditada al fenotipo ontogénico.

La ecomorfología hace referencia a la relación entre la morfología de los organismos y el rol ecológico, o modo de vida, que estos experimentan.
A diferencia de la morfología functional, que puede estudiarse en laboratorio, o en el registro fósil, sin necesidad de conocer el contexto natural en el que se desenvuelve el organismo, ya que se centra en la relación entre la estructura y función de un rasgo en particular, la ecomorfología es una aproximación centrada en todos los aspectos del fenotipo, no en algunos rasgos en particular y se sirve de la morfología funcional dándole un contexto biológico.
Por ejemplo la convergencia ocular, i.e., la orientación frontalizada de los ojos, se observa en una gran cantidad de linajes, como en aves nocturnas y/o cazadoras, como también en mamíferos como los carnívoros (placentados y marsupiales) o primates. En alguna medida en roedores nocturnos también se observa un grado de convergencia ocular mayor que en sus linajes hermanos de actividad diurna (tesis de Tomás Vega).
Cristopher Heesy (2008) analizó cráneos de un gran número (321) de taxa de mamíferos actuales y correlacionó el grado de convergencia con diversos aspectos del modo de vida. Evaluó cuales aspectos del fenotipo ontogénico, como el patrón de actividad (diurno/nocturno), la preferencia de sustrato (aéreo/arborícola/terrestre) y el grado de faunivoría guardaban relación con el grado de convergencia.Fig 1. Campo visual de la ardilla (a,b) y del lémur (c,d). Tomado de Hessy 2008.

Linajes nocturnos y crepusculares (tanto marsupiales como placentados) mostraron mayor convergencia ocular que los diurnos. Los placentados carnívoros (tanto diurnos como nocturnos) mostraron mayor convergencia que los forrajeros oportunistas o no-carnívoros. Sin embargo, no encontraron asociación entre convergencia y la preferencia de sustrato. Tales resultados son consistentes con el hecho de que la visión binocular permite detectar profundidad (la estereópsis es buena para los depredadores) y aumenta la agudeza visual (nocturnos), mientras que un mayor campo visual, en desmedro de la binocularidad, permite detectar al depredador en espacios abiertos como las praderas.

Una predicción importante de la filoepigénesis: Similitud en ecomorfologías implican una similitud en los fenotipos ontogénicos.

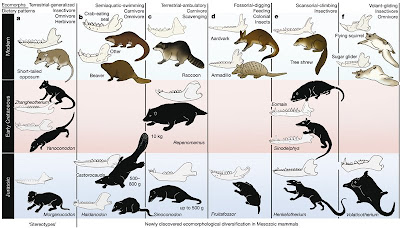
Por ejemplo en distintos linajes de mamíferos se pueden reconocer varias ecomorfologías, como forma de hormiguero, cola prensil, ojos frontalizados, etc. Lo más iluminador es que en cada linaje uno puede reconocer casi todos los modos de vida asi como sus especializaciones morfológicas.


Fig 2. Distintos ecomorfotipos ocurren en cada linaje.

De hecho, esto fue la causa de que la filogenia de mamíferos fuera un caos mientras se consideraban rasgos morfológicos en las reconstrucciones: todos los linajes tenian todos los ecomorfotipos, por lo que no fue hasta el advenimiento de reconstrucciones basadas en eventos moleculares raros que se pudo tener un esquema más claro de la filogenia de mamiferos existentes (ver Springer et al 2004).

Lo más bello de todo es que esta ubicuidad de modos de vida y morfos similares también ha ocurrido en tiempos remotos, a modo de experimentos evolutivos en linajes ancestrales de igual manera que en linajes actuales, como la siguiente figura aparecida en el paper de Zhe-Xi Luo (2007), el cual es tan iluminador que merecería su post propio.


Fig 3. Experimentos evolutivos de mamíferos del Mesozoico y su convergencia ecológica con ecomorfotipos de mamíferos modernos. Ecomorfos: a) terrestre insectivoro/omnivoro, b) Carnivoro/omnivoro semiacuático, c) carnivoro oportunista/terrestre, d) fosorial, cavador/hormiguero, e) trepador/insectívoro, f) planeador/omnívoro. En celeste: Jurásico, rosa: Cretásico temprano, blanco: actual.

Abrazos,

Rodrigo Suárez.


Wainwright PC (1991) Ecomorphology: Experimental Functional Anatomy for Ecological Problems. American Zoologist; 31(4):680-693

Bock WJ (1994) Concepts and methods in ecomorphology. J. Biosci.; 19(4):403-413.

Hessy CP (2008) Ecomorphology of orbit orientation and the adaptive significance of binocular vision in primates and other mammals. Brain Behav Evol;71(1):54-67.

Luo ZX (2007) Transformation and diversification in early mammal evolution. Nature;450(7172):1011-9

jueves, marzo 27, 2008

Phyloepigenetics II: Reversión de troglomorfismos en especies hypógeas

Sé que había prometido un ejemplo de dinosaurios, ya viene pronto pero por ahora acabo de comprarme un nuevo scanner así es que aprovecho de probarlo y compartir con uds esta impresionante foto que es a la vez un ejemplo magnífico de phyloepigenetics, (lo que acá bautizamos como diferencias epigenéticas entre especies), llevado a la comprobación experimental. La salamandra Proteus vive en las cavernas y por lo general tiene ojos vestigiales, apenas presentes, además de un color notablemente pálido


La salamandra de abajo también es Proteus pero ha sido crecida bajo un régimen de exposiciones a la luz. Como ven se parece bastante más a las especies de salamandras que viven fuera de las cavernas, desarrollando el ojo y además un sensual tono bronceado. Un detalle interesante: este experimento se hace con luz roja, ya que con luz normal la epidermis sobre el ojo se pigmenta con fuerza e impide que la luz incida en él. Otra cosa; este experimento ha sido repetido por distintos investigadores, figurando en algunos libros de texto. Lo que rara vez se menciona es que el primero en hacerlo fue Paul Kammerer (de cuyo libro saqué la imagen). Y bueno, para los que puedan tenerle desconfianza a Kammerer, abajo tienen un experimento parecido, comparando la respuesta a la luz de peces hypógeos con la de peces de la superficie, e híbridos entre los dos; podemos ver que hay un efecto epigenético en las diferencias; crecidos con luz los ojitos del pez hypógeo son bastante más notorios, y los peces de superficie presentan ojos más pequeños si se crecen sin luz.

Aunque sin duda hay un componente genético, también es indudable que hay un componente epigenético. No es necesario negar el componente genético. La esencia del desafío a Lewontin, es que sí existe un nivel no-genético de causalidad de diferencias evolutivas.

Ref:
Romero A, Green SM. (2005) The end of regressive evolution: examining and interpreting the evidence from cave fishes. Journal of Fish Biology 67, 3–32

martes, marzo 25, 2008

Population genetics & game theory are not "The logic of life"

The theoretical disciplines of population genetics and game theory are upheld by neodarwinians as general explanatory frameworks for the study of evolution. These provide explanations that do not require understanding of development, physiology, and practically all mechanistic causation at an organismic level, even if these are acknowledged to be crucial. All organism-level mechanisms can be taken as simple "givens" imposed from the outside as from a completely mysterious black box.
This divorce and alienation of organismic biology from "evolutionary theory" was philosophically formalized by Ernst Mayr. To Mayr, any study at the organismic level, for instance of physiology, or developmental mechanisms, can only answer "how" questions of immediate mechanism; whereas evolutionary science is in charge of a different level of analysis of "why" questions and "ultimate" causation (by long-term selection, of course). Immediate mechanism apparently could be "whatever". Mayr then manages to make evolutionary science autonomous as a discipline....but only by means of turning its back on organismic biology.
The effect is disastrous. Neodarwinists have become addicted to attaching ad-hoc explanations to simply "given" organismal conditions, and destine all that level of causation to a wastepaper basket labeled "NON-evolutionary proximal mechanisms". Indeed the implication is that proximal mechanism is not an important part of properly "evolutionary" explanation. But then, if there is no general theory for biology, with no theoretical notions about all that biology that is going on at organismal level, how can a neodarwinist claim to have found a general framework for evolutionary biology? Indeed, is it even possible to have a general theory for evolution, without having a general theory for biology? A truly satisfactory evolutionary theoretical framework requires good theoretical grounds for handling the organismic level, rather than a philosophical argument to ignore it. Truth is, neodarwinists have no theory of organism.

That something is wrong with the "autonomy" of "evolutionary" science surfaces in many details. Consider, for instance, just how impervious the general frameworks of population genetics and game theory are to any data input from other fields of research, and specially so the more historical such as phylogenetic systematics. Consider, for instance, just how useless population genetics is to explain how reptilian jaw bones ended in the mammalian middle ear. The analogy in physics would perhaps be a theoretical physics-cosmology that won't take any lesson from astronomy and is not too helpful to explain any astronomical phenomenon.

In contrast, the systemic -historic perspective fully acknowledges and further emphasizes the historical nature of evolutionary explanations. Plus, we have the notion of autopoiesis for the theoretical handling of the organism level...

sábado, marzo 22, 2008

Whereupon Lewontin is criticized, and "Phyloepigenetics" is born

In "The triple helix" Lewontin seems to contradict himself a bit on the importance of genes. Consider this paragraph:

"Of course it is true that lions look different from lambs and chimps and humans because they have different genes, and a satisfactory explanation for the differences between lions, lambs, chimps and us need not involve other causal factors"
(Italics are mine)

Since Lewontin in his next breath talks quite a bit about the importance of environment and random noise in development, we are forced to wonder why they would not count as causal factors when it comes to explaining inter-species differences.

I suspect this is the result of a typically neodarwinian mistake born from the circular logic of their definition of evolution. Because "evolution is genetic change of populations", when observing a difference that is species-level (evolutionary) they get confused and think they can assume that difference to be the result of natural selection for genetic mutations (unless it is a very obviously a non-adaptive difference, in which case it is still genetic mutations, and drift rather than selection) . This argument in fact is repeatedly encountered in the discussion over whether human "intelligence genes" exist or not. "Evolutionary" psychologists (ultradarwinians) argue that the fact the human brain has evolved from smaller, less-smart brains like those of other apes implies natural selection for "intelligence genes" must have occurred in the human line, and thus that genes capable of increasing fitness through intelligence must indeed exist (The fact being that their effects are difficult to detect. Only using lots of data, statistical correlations for only very small increases in IQ scores is all that is ever detected for an alleged "intelligence gene)"

This argument, that seems so impeccable to those accustomed to thinking with a neodarwinian cap, can be exposed for the misleading definition-game it is when we stop to analize a few case-studies. The human trait of bipedism for instance. Below is the photograph of one of two "wolf girls", Amala and kamala, that were raised by wolves in India and then "rescued" into civilization in the 1920's. Extensive written and photographic documentation were produced by the priest who took care of them. As you can see in the photograph, the girls used quadrupedal, rather than bipedal, locomotion. The priest tried hard but made little progress training them into walking like people. They did not speak and and had obviously subnormal cognitive capacities for human standards .


You would think that genetic influences over general human anatomical structure would be sufficient to lead to bipedality. However, let us remember that in our ontogeny we do, in fact, learn to walk bipedally. This important difference between humans and other animals seems to not come about without an appropiate context, provided by interactions among humans, which are in fact required for preserving the behavior of bipedal walking .

Let's talk about symbolic language, another difference between humans and other species. Beyond Amala and Kamala, it is clear from numerous documented cases of feral or cruel upbringing of children, that children deprived from human interaction will not learn to speak and will develop a severely subnormal intelligence. But perhaps more interesting is the reverse experiment, that is, not only is it possible that a human may not learn to speak despite of any "language genes", but also, it is a fact that non-human primates can learn sign language and use it to communicate, despite any lack of "language genes". In this case, an important part of that species difference has been phenocopied in the other species, once again, with the aid of an adequate environmental context.

So, there definitely is an epigenetic component to the explanation of cross-species differences. A purely genetic causation could never be a satisfactory explanation. We will find that, as we compare the terminal taxa of a phylogentic tree, we will be able to see nodes in which clearly different epigenetic conditions have become established and can be directly responsible for great phenotypic differences or epigenetic apomorphies ; the sublime confirmation of everything is, of course, the experimental phenocopy or reversal through alteration of the suspect epigenetic factor.

I can think of several confirmed examples from non-human organisms and simple phenotypic traits, as well as several epigenetic hypotheses that have never been discussed before as explanations of differences between species, perhaps for lack of a more formal approach. I thus propose we begin by calling this approach Phyloepigenetics.

The intention of this post is to start several posts where we will be studying and discussing probable cases of epigenetic differences at the species-level, and thus make ourselves with a litte more "cultural baggage" to defend this new approach. I invite everyone to share examples!! I will soon be posting one about ...dinosaurs! Phyloepigenetics can be paleo, too.

Reference:
Lewontin, R. 2000 The triple Helix: Gene, Organism and Environment. Harvard University Press.

La nueva filogenómica animal: Historial de vaticinios

Dunn et al. 2008
Ya en un anterior post sobre chascarros filogenéticos me había dedicado, como buen "Ayatola" de la cladística, a fustigar algunos trabajos hedionditos de filogenómica publicados en Science y Nature (Rokas et al 2005, Delsuc et al 2006). La idea de la filogenómica es comparar la mayor cantidad de genes posible. El problemita es que se suele dejar fuera del análisis a bichos clave para los cuales no existe la información sobre tantos genes. Es sabido que el muestreo taxonómico es crucial a la topología del árbol en cualquier análisis filogenético. Por eso, cuando se publican trabajos con muestreos taxonómicos incompletos y luego se presentan sus conclusiones como "revolucionarias", no podemos sino inferir que tanto autores como revisores parecen haberse engañado de que tener una gran cantidad de genes no sólo es buena excusa para deja fuera taxa cruciales, sino que aún, debe ser mejor que estudios donde hay una mejor muestra taxonómica pero uno o pocos genes.

Bueno, ahora salió este trabajito, Dunn et al. 2008 donde hacen filogenómica de una abultada lista de genes, ahora sí, con buen muestreo taxonómico, CASI perfecto diría yo. Tengo la satisfacción de ver cumplidos en gran medida mis vaticinios previos. Desaparecen las politomías que Sean Carrol estaba tratando tan torpemente de utilizar como evidencia de algún tipo de "explosión evolutiva" (Rokas et al. 2005). En el olvido quedó aquella aberrante unión entre equinodermos y cefalocordados del otro estudio aquél (Delsuc et al. 2006). Una cuestión que venía molestándome hace AÑOS era la posición de los gusanos planos Acoela, problemática en la evidencia molecular. Su simplificada morfología es considerada por algunos como ideal representante de los primeros bilateria, idea que no comparto ya que son muchas nuestras semejanzas embriológicas y de plan corporal con medusas y ctenóforos no compartidas con estos gusanitos. Distintos análisis moleculares los colocaban, unos como protostomos derivados, junto a los platyhelmynthes, otros como el grupo hermano de los bilateria. Esta última parecía imponerse como conclusión repetida de todos los analisis más recientes, hasta me venía resignando a pensar que al menos dio grupo hermano y no bilateria anidada dentro de acoela, lo cual permitía insistir "aún" que su simple morfología podía no ser primitiva sino una simplificación secundaria.
Bueno, pues el nuevo estudio filogenómico de Dunn los coloca como protostomos derivados, si bien no platyhelmiynthes (y aún con afinidades específicas inciertas). Lo que esto significa es que hasta el día de hoy no existe ninguna evidencia comparativa-filogenética para defender la idea de que los primeros bilateria eran gusanos planos sin cavidades corporales (los acoela no tienen ni estómago, si mal no recuerdo). Se confirma además la posición de los Chaetognatha como una de las ramas más basales de protostomos. Esto significa que permanece vigente la posibilidad de que los primeros bilateria hayan presentado adultos nadadores, como ya lo sugerían Vargas y Aboitiz (2005) como alternativa a la idea de un gusano plano.

Algunos recordarán la molestia que manifesté con los estudios filogenómicos previos que agrupaban a urocordados y vertebrados. Este resultado fue transmitido con bombos y platillos y hace poco tuve la patética experiencia de asistir a la reunion de la SICB (Society for integrative and comparative biology) y ver en como 5 diapositivas de distintos grupos de investigación la incorporación de esta "corrección"... ya es todo un jodido nuevo paradigma, parece que ningún merme siquiera osó cuestionar un Nature. Puaj...Si hicieran las tareas sabrían que el único estudio reciente con un muestreo decente si bien imperfecto (Bourlat et al 2006) encontró que el genoma mitocondrial apoya decididamente la hipótesis clásica que agrupa a vertebrados con cefalocordados. Bourlat et al. 2006,: datos mitocondriales con un muestreo decente de cordados
Es cierto que sucesivos estudios filogenómicos de genes nucleares, como el de Dunn, han vuelto a recuperar el nodo urocordados+vertebrados; pero en cada nuevo estudio filogenómico, la mayor cantidad de datos y taxa, más que sumar apoyo para esa hipótesis, la ha ido debilitando. Nótese que en este trabajo, el bootstrap value para ese nodo es uno de los más cagones: apenas>70%, el más bajo hasta ahora. Siendo uno de los resultados más esperados, sea para confirmar o refutar, el texto de Dunn et al. 2008 guarda un sepulcral silencio sobre este "famoso" nodo. De todas formas, el estudio de Dunn no está habilitado para atacar esta pregunta específica; Dunn sólo tiene al ascidio Cyona, ser humano, pollo y amphioxus...ningun estudio hasta el momento ha incluido a algún appendicularia (ej. Oikopleura) que son con toda probabilidad ramas de urocordados basales. Aquí, su ayatola de la cladística les vaticina que si se hacen los estudios filogenómicos de cordados con un mejor muestreo taxonómico, seguirán debilitando ese nodo espúreo y probablemente, acaben por apoyar la hipótesis clásica, junto a la morfología y el genoma mitocondrial.

Resumiendo: después de un montón de "revoluciones" de cartón, cuando se hace como corresponde, la filogenómica a la larga confirma muchos resultados de cuidadosos estudios previos (por ejemplo, Peterson y Eernisse 2001) que usaron rasgos morfológicos combinados quizás con un sólo gen (típicamente el del RNA ribosomal 18s), pero bien escogido (con una tasa de mutación adecuada) , y con un buen muestreo taxonómico.

De a poco se va reconociendo un patrón. Cuando ocurre uno de los famosos "choques" entre evidencia molecular "de punta", con una robusta conclusión morfológica, con frecuencia ha sido demostrado que es resultado de un pobre muestreo taxonómico de los datos moleculares; la otra fuente de artefacto está provisto por el hecho establecido de que hay taxa "excepcionales" cuya evolución molecular es anómala y que no sólo son difíciles de situar sino que además obscurecen las afinidades de los otros grupos, por ejemplo, por "long-branch" taxa, que por "long-branch attraction" tienden a agruparse artficialmente con otros grupos. De hecho en el análisis de Dunn nada menos que 13 de los 77 taxa originalmente utilizados tenían posición inestable. Estos no se incluyeron en la figura del arbolito, de 64 taxa, pero sí en el cálculo del bootstrap support de cada nodo. La verdad es que hace mucho tiempo que se sabe que los urocordados son ultra long-branch. Ya está bueno de tanta ingenuidad aparente con esta reconocidad fuente de error.

Un último comentario y termino con mi soporífero e interminable sermón. El estudio de Dunn et al presenta a los ctenóforos como grupo hermano de todos los demás metazoa; incluyendo las esponjas. Algo así está como para pensar que o bien las esponjas descienden de una gelatina, o que a partir de una condición de esponja la condición de epiteliozoo fue adquirida en tres ocasiones diferentes por ctenóforos, cnidarios y bilateria. En cualquier caso estamos hablando de cientos de reversiones en los poriferos o cientos de convergencias en los demás linajes, una historia morfológica nada muy parsimoniosa (en chileno: una reverenda weá). Dunn et al. reconocen que "This result, which has not been postulated before, should be viewed as provisional until more data are considered from placozoans and additional sponges". Efectivamente, el gran ausente en la fiesta de Dunn et al. es el phylum Placozoa, crucial si vamos a comparar esponjas con los demás. Pese al evidente agujero, Dunn et al. se muestran aún bastante dispuestos a creer que han descubierto una pulenta evidencia de que debemos repensar todo lo que sabemos sobre evolución de animales tempranos para incluir radicales convergencias o desparición sin rastros de cientos de rasgos derivados.
Revolución, o artefacto? Uds ya se imaginarán la opinión, y predicción del Ayatola...La historia morfológica más parsimoniosa es que los epiteliozoos son monofiléticos y los ctenóforos probablemente el grupo hermano de bilateria.

Lo que pensaba en Vargas y Aboitiz (2005), y que sigo pensando hoy en día.


Referencias:

Bourlat SJ et al. (2006) Deuterostome phylogeny reveals monophyletic
chordates and the new phylum Xenoturbellida. Nature 444: 85-88

Delsuc, F. et al. (2006) Tunicates and not cephalochordates are the closest living relatives
of vertebrates. Nature 439, 965–968

Dunn, C. et al. (2008) Broad phylogenomic sampling improves resolution of
the animal tree of life. Nature doi:10.1038/nature06614 (publicación previa online)

Peterson, K. J., and Eernisse, D. J. (2001). Animal phylogeny and the ancestry of bilaterians: inferences from morphology and 18S rDNA sequences. Evo. & Devo. 3: 170–205.

Rokas, A., Kruger, D. & Carroll, S. B. (2005) Animal evolution and the molecular signature of radiations compressed in time. Science 310: 1933–1938.

Vargas, A, and Aboitiz, F. (2005) How ancient is the adult swimming capacity in the lineage leading to Euchordates? Evo. & Devo. 7: 171-174

viernes, marzo 21, 2008

Varela y la "Teleología interna"

Estoy leyendo el trabajo de Weber y Varela (2002). El tipo de teleología que plantean es, como es de esperar, diferente al típico. Conserva la noción de propósito, pero no es un propósito "externo" como es el adaptacionismo que se intenta explicar con la teleonomía y selección natural, sino que se inspiran en un propósito interno intrínseco que dicen permite hablar de "propósitos naturales" en sistemas con auto-organización. Esto se inspira directamente en Kant : "A thing exists as a natural purpose if it is both cause and effect of itself". Como los sistemas autopoiéticos se auto-producen, estaría, pues, provistos de propósito "natural".

Esta perpectiva es comprensible, pero sospecho que continúa habiendo algo genuinamente erróneo en toda noción de propósito o final, con el ya mencionado potencial de "ceguera" que produce introducir una noción explicativa que pasa por alto los mecanismos.

La verdad es que ya en el 2000 cuando compré mi flamante copia de "El fenómeno de la vida" (que hoy se me cae a pedazos) me había quedado de ceño fruncido con este párrafo de Varela:

"La fuente de esta creacion-de-mundos es siempre un quiebre en la autopoiesis , sea menor como los cambios de concentración de un metabolizado, o mayor como la ruptura de los bordes. Debido a la naturaleza misma de la autopoiesis, -ilustrada por la reparación de la membrana en el ejemplo mínimo simulado más arriba- todo quiebre puede verse como el inicio de una acción, por parte del sistema sobre lo que falta, de manera que se mantenga la identidad. Repito: no hay una teleología implícita en este "de manera que": esto es lo que implica la lógica autorreferencial de la autopoiesis, en primer lugar. La acción se hará visible como un intento de modificar su mundo: cambio de lugar de diferentes nutrientes, aumento de la corriente de un metabolizado por síntesis metabólica, etc."

(Énfasis en cursiva lo puse yo.)

Aunque en esa ocasión Varela negó la teleología de la boca hacia afuera, creo que está claro que ya estaba pensando teleológicamente, lo que luego lo llevó a decidir asimilar el término, en vez de negarlo.

Pero tomemos el ejemplo mínimo de la ruptura y regeneración de la membrana celular. La descripción de Varela me parece que no aplica correctamente la noción sistémica de adaptación.

Si se produjera un auténtico quiebre de la autopoiesis, el sistema se desintegraría. La pérdida de un trozo de menbrana y su posterior regeneración no representa una interacción destructiva, con pérdida de la organización autopoiética, sino que corresponde a una perturbación. La clave: La mebrana no regenera "de manera que" se mantenga la identidad, o con el "propósito" de conservar la autopoiesis; más bien, la membrana regenera como consecuencia de que la autopoiesis aún existe, no se ha interrumpido y las relaciones productivas distribuidas, propias de la autopoiesis, rápidamente regeneran la membrana. Si el trozo de mebrana perdido fuera lo suficientemente grande, la organización autopoiética resulta desarticulada y tenemos que el ser vivo sencillamente se desintegra.

El hecho de que cualquier fenómeno con clausura operacional pueda describirse como a la vez causa y efecto de sí mismo no consituye una verdadera violación del orden cósmico de causalidad temporal.
Lo que ocurre en un ser vivo no ocurre con el propósito de conservar la autopoiesis, así como tampoco ocurre con el propósito de pasar los genes a la generación siguiente (la teleonomía de Monod).

Ref:

Varela, F. 2000. El fenómeno de la vida. Dolmen Ediciones

Weber A y Varela F. 2002. Life after Kant: Natural purposes and the autopoietic foundations of biological individuality. Phenomenology and the Cognitive Sciences 1: 97–125.

miércoles, marzo 19, 2008

Leyes sistémicas, según Maturana

Aquí va el link a un trabajo de Humberto Maturana, "a penultimate version of Kybernetes vol.34, nos. 1/2, 2005 pp. 54-88", donde plantea algunas "leyes sistémicas":

Systemic law: 1. Whenever an observer distinguishes a collection of elements that are interconnected in a way such that if he or she acts on one of them acts on all, the observer distinguishes a system.

According to this systemic law whatever encounters an organism may have as a molecular system triggers in it a flow of molecular changes that extends through it. The way in which this flow of molecular changes happens in any particular organisms depends at any instant, on the dynamic molecular architecture of the organism at that instant. At the same time this systemic law connotes the spontaneous constitution of systems through the operational coherence of their components.

Systemic law: 2. Whenever in a collection of elements a configuration of relations begins to be conserved, a space is opened for all to change around the configuration of relations being conserved.

According to this systemic law the conservation of a particular configuration of relations in a collection of elements results in that such collection of elements arises as a totality in a relational space defined by a dynamic border that arises through the conservation of the configuration of relations conserved

Systemic law: 3. Nothing occurs in the operation of the cosmos in general, or in the operation of living systems in particular, because the consequences of that operation are or may be in any way necessary for its occurrence.

According to this systemic law, teleological explanatory notions can only be accepted as metaphoric evocations of the understanding of the observer, not as characterisations of the operation of the processes being explained. As such teleological notions sooner than later generate domains of blindness for the newcomers if they are not protected by their understanding.

¿Qué tal les parece? ¿Observaciones?

Herança: a re-produção sistêmica de um processo

A palavra herança tem dois sentidos principais: a) A herança social de patrimônios, títulos e direitos e (b) a herança biológica de característica, doenças etc. Historicamente, o emprego da palavra no primeiro sentido precede o segundo - a palavra herança surgiu para designar a manutenção e transmissão de bens entre famílias e, posteriormente, foi empregada metaforicamente para designar a recorrência de caracacterísticas biológicas - primeiro como adjetivo, em expressões como "doença hereditária", e depois como substantivo. No início do século XIX, médicos franceses passaram a empregar o substantivo heredité para designar uma classe de fenômenos biológicos: a reaparição de características entre gerações (para mais detalhes ver os trabalhos de Lopez-Beltran)
A grande consequência do surgimento do conceito de herança biológica foi tornar a forma dos seres vivos um fenômeno histórico. A forma de um organismo era consequência da forma do organismo anterior e, portanto, de uma história. Repare que isto é muito distinto das conceituações do século XVIII, onde a forma era algo transcedental, a manifestação de um tipo ou essência. Tanto para preformacionistas quanto epigenetista, a forma não era herdada. Ou ela preexistia ou era gerada de novo. Somente no fim do século XVIII, com percepção de que os tipos eram variáveis, de que haviam raças, de que havia regeneração, etc., foi possível que autores como Buffon e Lamarck discutissem a permanência histórica de degenerações e desvios do tipo.
Esta noção foi aprofundada no século XIX, quando a herança passou de um fenômeno secundário, resposável pela permanência de peculariedades como o albinismo e o lábio leporino, para a explicação central da forma. O que surgiu com o conceito de herança foi uma explicação histórica da forma e suas variações.
Evidentemente, a concepção de herança biológica abriu caminho para teorias transformacionistas que floresceram no século XIX . Não por acaso, Spencer e Darwin foram os primeiros autores a empregarem as palavras inglesas inheritance and heredity no sentido biológico. Mas a contribuição mais importante dos ingleses foi propor a existência de partículas hereditárias (as unidades fisiológicas de Spencer e as gêmulas de Darwin) para explicar a recorrência da forma. Este conceito poderoso - partículas capazes de transmitir a forma (de in-formar) - substituiu a noção fenomenológica original dos franceses. Para autores como Prosper Lucas, por exemplo, a herança era algo semelhante a uma força, um fenômeno quantitativo mensurável (para mais detalhes ver Jean Gayon).
Portanto, no fim do século XIX se intoduziu o conceito de material hereditário. Este se multiplicou e ganhou força como as micelas (Nägeli), os idioblastos (Hertwig), os pangenes (De Vries), os biósforos (Weissman), etc. E, embora poucas vezes se reconheça, a biologia do século XX herda e elabora esta noção. A teoria do gene pressupõe a existência de um material hereditário, de partículas capazes de determinar e transmitir a forma. Ela parte do pressuposto ontológico de que existe um material hereditário.


Esta noção foi mantida e aprofundada pela genética molecular clássica. A herança passou a ser a transmissão de intruções codificadas e o desenvolvimento a manifestação destas instruções. Herança e transmissão genética se tornaram tão entrelaçadas que hoje é difícil que alguém possa conceber a herança sem um material hereditário.


Contudo, no século XXI, não é apenas possível, mas urgente conceber a herança sem a noção de partículas hereditárias. Primeiro, porque a genética molecular pós-genômica nos mostra que os genes não contém representações ou instruções para forma. Eles são moldes utilizados pelo sistema para produção de outras macromoléculas, não portadores da forma. Segundo, porque a repetição de um processo não necessita de um programa ou instruções (vide o caso das sucessões ecológicas). Lembre-se que a herança inicialmente não era concebida como a transmissão de partículas. O fenômeno herança diz respeito ao aparecimento de similaridades entre gerações, não a transmissão de similaridades.
As similaridades hereditárias ocorrem porque um processo se repete. Porque componentes e relações semelhantes reocorrem. Porque um olho ou um pé é re-produzido conservando certa topologia estrutural. É muito mais sensato hoje abandonarmos o velho esqueminha weismanniano de transmissão de partículas hereditárias e abordarmos a herança como um fenômeno prroduzido pela conservação de uma dinâmica estrutural e condutual.  


GAYON, J. From Measurement to Organization: A Philosophical Scheme for the History of the Concept of Heredity. In: BEURTON, P. J., FALK, R. e RHEINBERGER, H. J. (Ed.). The Concept of the Gene in Development and Evolution. Historical and Epistemological Perspectives. Cambridge: Cambridge University Press, 2000, p.69-90
LÓPEZ-BELTRAN, C. Forging heredity: from metaphor to cause, a reification story. Studies in History and Philosophy of Science Part C: Biological and Biomedical Sciences, v.25, n.2, p.211-35. 1994.
______. In the Cradle of Heredity; French Physicians and L'Hérédité Naturelle in the Early 19th Century. Journal of the History of Biology, v.37, n.1, p.39-72. 2004.
______. The Medical Origins of Heredity. In: MÜLLER-WILLE, S. e RHEINBERGER, H.-J. (Ed.). Heredity Produced: At the Crossroads of Biology, Politics, and Culture, 1500-1870. Cambridge: MIT Press, 2007

Autopoiesis, acoplamiento estructural y cognición.

Artículo de Humberto Maturana, publicado en el instituto matríztico, donde revisa la historia de estas y otras nociones y que se puede bajar desde aquí

domingo, marzo 16, 2008

Systemic vitalism, or the distinction of teleonomy from teleology

The concept of "vitalism" has been traditionally associated to pseudoscience, a metaphysical concept away from any empirisism. It is often referred to as the action of a "vital force" or "entelechy" proper to organic matter, that governs and directs living processes. However, Ortega y Gasset (see the post below) defines vitalism as "any biological theory that considers organic phenomena irreductible to physico-chemical principles" and states that it can be conceived from two radically different points of view: a) the assumption of a special form of entelechy or "vital force" distinct from physicochemical forces, or b) a rigurous empiric approach to study vital phenomena in the feral peculiarity they manifest, without assuming any mysticism, but avoiding a dramatic reduction to its physical properties.

In light of this distinction it is worthwhile to recall some concepts such as "emergence", a core notion of complex systems. "Emergent properties" are not properties of any component of the system, but of the system as a whole. Examples vary from "hurricanes" to "swarm intelligence" and "consciousness". As opossed to pseudoscientific vitalism, emergence is not restricted to organic matter, but is proper to systems.

Teleonomy is a term coined for the "apparent purposefulness" of living processes, as contrasted from "teleology", a concept that indicates intention of an external agent. We may well accept the distinction, although it is a common vice in scientist to confuse them, but an important question still remains: what is the biological process that lets us, as observers, to recall teleonomy?

Ernst Mayr (1965) have said: "It would seem useful to rigidly restrict the term teleonomic to systems operating on the basis of a program of coded information", but do we need to recall "information" to explain "apparent purposefulness"? It seems to me that to invoke "coded information" is as finalist as invoking an entelechy's "intention", so it would not be an acceptable biological answer.

It seems that our mechanicist tradition has forced us to reduce causes to the physico-chemical conformation, rather than to the organization. This reductionism has not only been uncapable of explaining biological phenomena, but has kept biologists in an Aristotelian "formal cause" reasoning, where genetic information is the entelechy able to determine the parts and relationships within organisms, thereby equating the metaphysical and organisational forms of vitalism.

A systemic answer to the "apparent purposefulness" dilemma can be envisioned by recalling the ontogenic phenotype/ontogenic niche relationship (the particular manner of living of an organism of a certain lineage). So when an investigator is observing an organism she recognizes a particular behaviour and can visualize a response for a given situation: she is bringing forth an operational congruence (adaptation) of the organism with its niche, that although pertains to the virtual domain of her observations, would seem to respond to an "apparent purposefulness". However, the organism is free to display behaviours distinct from those expected by the observed, as long as it maintains its adaptation, so the "apparent purposefulness" is only an observational artifact proper to the mind of the investigator accostumed to observe configurations.

Rodrigo Suárez

miércoles, marzo 12, 2008

The "Palau man" paper: The return of precladistic paleontology?

I have just posted this message on the blog of the online community manager of PLOS:

Hi Coturnix,
I haven' heard yet much criticism of the Berger et al. paper, so I guess I'll be one of the first.

I consider that Berger hasn't really established that these tiny Palauans are H. sapiens. This could be a species close to H. sapiens (perhaps the closest known so far and thus "sister" species) that has retained some plesiomorphic traits yet shares several apomorphies with H. sapiens (until now thought to be "autapomorphies", exclusively of sapiens)

To discard this possibility and prove that tiny Palauans are H. sapiens, Berger et al. would have to show that their tiny Palauans are phylogenetically nested within H. sapiens (and not "right outside"). However they did not make a phylogenetic analysis (despite disposing of several specimens and good morphological data)

Without that, they are simply preferring hypotheses of convergence or reversal rather than homology for the primitive traits, which is contra-parsimony unless further evidence is provided; and for that, they would need phylogenetic analysis.
A little PAUP on the morphological traits, that's all I'm asking for. This is standard procedure in systematics and paleontology when describing a new fossil of evolutionary relevance. Statements such as "We feel that the most parsimonious, and most reasonable, interpretation of the human fossil assemblage from Palau is that they derive from a small-bodied population of H. sapiens" do not substitute for actual phylogenetic analysis using parsimony.
If Berger et al did that analysis, they would KNOW, rather than FEEL, whether "tiny palauans are H. sapiens" is REALLY the most parsimonious hypothesis or not.